수상돌기 (Dendrite, 가지돌기)
수상돌기(Dendrite, 가지돌기)는 신경세포(뉴런)의 세포체(Soma)에서 나뭇가지처럼 사방으로 뻗어나온 여러 갈래의 원형질 돌기입니다. 수천~수만 개의 시냅스를 통해 다른 뉴런의 축삭말단(Axon terminal)에서 분비된 신경전달물질 신호를 수신하고, 이를 국소 전위(시냅스후 전위, PSP)로 변환한 뒤 시공간적으로 정밀하게 합산하여 축삭둔덕(Axon hillock)의 활동전위 발화 여부를 결정하는 뉴런의 핵심 입력 및 연산 장치입니다.
수상돌기의 정의와 해부학적 특징
인간의 대뇌피질에는 약 160억~200억 개의 뉴런이 존재하며, 각 피라미드 뉴런(Pyramidal neuron)은 거대한 수상돌기 나무(Dendritic Arbor)를 형성합니다. 수상돌기는 세포체에 가까울수록 직경이 굵고, 말단으로 갈수록 점차 가늘어지며 복잡하게 분지하여 신경망의 고밀도 연결성을 실현합니다.
정점 수상돌기 (Apical Dendrite)
피라미드 세포의 정점에서 수직으로 솟아올라 피질 표층(I층)까지 뻗어가는 주 수상돌기입니다. 원거리 피질 영역 및 시상(Thalamus)의 비특이적 투사 신호를 수신하여 하향식(Top-down) 주의집중과 의식적 맥락 정보를 통합합니다.
기저 수상돌기 (Basal Dendrites)
세포체의 바닥면에서 수평 방향으로 방사상으로 뻗어나가는 다수의 수상돌기입니다. 인접한 국소 신경망의 흥분성 및 억제성 신호를 즉각적으로 수신하여 상향식(Bottom-up) 감각 정보를 처리합니다.
수상돌기 가시(Dendritic Spine)의 구조와 기능적 의의
중추신경계의 흥분성 시냅스(주로 글루탐산 시냅스)의 90% 이상은 수상돌기 본체에 직접 형성되지 않고, 수상돌기 표면에 작은 버섯 모양으로 돌출된 미세 구조체인 수상돌기 가시(Dendritic Spine)에 형성됩니다.
화학적·전기적 구획화
가시의 좁은 목(Neck) 부위는 확산 저항을 형성하여 시냅스 활성화 시 유입된 칼슘 이온(Ca2+)이 수상돌기 줄기로 유출되지 않고 가시 머리(Head) 내에 고농도로 격리되도록 합니다.
시냅스후 치밀질 (PSD)
가시 머리의 막 아래에는 AMPA 및 NMDA 글루탐산 수용체, PSD-95, CaMKII 등 수백 종류의 신호전달 단백질이 복합체를 이루는 시냅스후 치밀질(Postsynaptic Density)이 밀집되어 있습니다.
형태적 가소성과 기억
가시는 버섯형(Mushroom), 얇은형(Thin), 뭉툭형(Stubby) 등 다양한 형태로 존재하며, 액틴 필라멘트(Actin cytoskeleton)의 재배열을 통해 수 초~수 분 내에 크기와 수가 능동적으로 변화합니다.
수상돌기의 시공간적 신호 통합 (Synaptic Integration)
단일 시냅스에서 발생하는 흥분성 시냅스후 전위(EPSP)의 크기는 약 0.5~2mV에 불과하여 활동전위 역치(약 15~20mV 탈분극)를 유발하기에 불충분합니다. 뉴런은 수상돌기를 통해 수많은 입력 신호를 시공간적으로 합산(Summation)합니다.
1. 공간적 가중 (Spatial Summation)
수상돌기 나무의 서로 다른 여러 위치에서 동시에 도착한 시냅스 입력들이 세포막을 따라 퍼져나가면서 세포체와 축삭둔덕에서 중첩되어 합산되는 과정입니다.
2. 시간적 가중 (Temporal Summation)
단일 시냅스에 고빈도의 연속적인 자극이 가해질 때, 이전 EPSP가 소멸하기 전에 다음 EPSP가 연속적으로 도달하여 계단식으로 전위가 중첩·증폭되는 과정입니다.
능동적 수지상 전파와 수상돌기 스파이크 (Dendritic Spikes)
과거에는 수상돌기가 단순한 수동적 케이블(Passive cable)로 여겨졌으나, 현대 전기생리학은 수상돌기 막에 전압개폐성 Na+ 및 Ca2+ 통로, NMDA 수용체가 고밀도로 분포함을 밝혔습니다. 강한 동시 자극이 유입되면 국소적인 수지상 전위(Dendritic Spike / NMDA Spike)가 능동적으로 점화되어 감쇠 없이 세포체로 강력하게 전달됩니다.
수상돌기 (Dendrite) 와 축삭 (Axon) 의 신경해부학적 대비
| 구분 항목 | 수상돌기 (Dendrite, 가지돌기) | 축삭 (Axon, 축삭돌기) |
|---|---|---|
| 기능적 성격 | 신호 수신 및 통합 (입력 장치, Input Unit) | 활동전위 전도 및 신경전달물질 방출 (출력 장치, Output Unit) |
| 세포당 개수 및 형태 | 다수(여러 개), 나뭇가지 모양으로 복잡 분지, 세포체에서 멀어질수록 가늘어짐 | 보통 1개(긴 원통형), 전 구간 균일한 직경 유지, 말단에서 측지 형성 |
| 수초화 (Myelination) | 무수 신경섬유 (수초 없음) | 대부분 수초(Myelin Sheath)로 싸여 도약전도 수행 |
| 세포소기관 분포 | 리보솜, 거친면 소포체(Nissl body), 골지체 존재 → 국소 단백질 합성 가능 | 미세소관과 미토콘드리아 중심, 리보솜 결핍 (세포체로부터 축삭수송 의존) |
| 전기적 신호 특성 | 점진적 전위 (Graded Potentials : EPSP, IPSP, NMDA spikes) | 실무율의 활동전위 (All-or-None Action Potentials) |
| 시냅스 특화 구조 | 수상돌기 가시(Dendritic Spines) 및 시냅스후 치밀질(PSD) 형성 | 축삭말단 단추(Axon Terminals / Boutons) 및 시냅스 소포(Vesicles) 집적 |
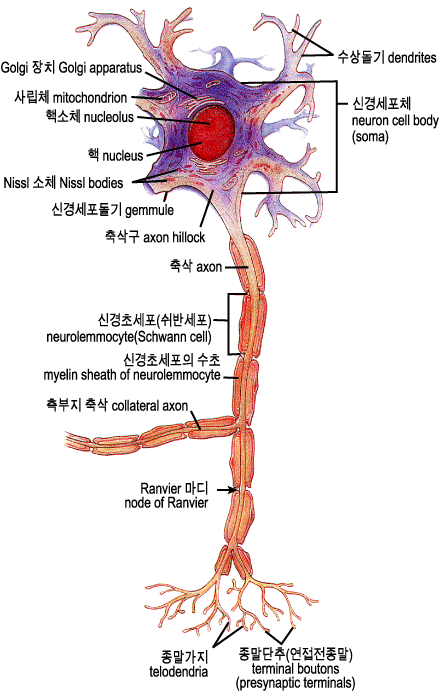
신경세포(뉴런)의 기본 구조도
신경세포는 1개의 세포체(Cell body / Soma)와 자극을 전달하는 1개의 축삭(Axon), 그리고 주변 뉴런들로부터 신호를 받아들이는 수많은 수상돌기(Dendrite)로 구성됩니다.
시냅스 가소성과 학습·기억의 분자 메커니즘
학습과 기억의 세포학적 기초인 장기강화(Long-Term Potentiation, LTP)와 장기억제(Long-Term Depression, LTD)는 모두 수상돌기 가시(Spine) 내부의 분자 생화학적 반응 경로에 의해 작동합니다.
장기강화 (LTP) : 가시의 성장과 시냅스 강화
고빈도 자극에 의해 시냅스후 막이 강하게 탈분극되면 Mg2+ 블록이 제거되며 NMDA 수용체가 개방됩니다. 유입된 Ca2+이 CaMKII를 활성화하여 예비 AMPA 수용체를 시냅스 막에 삽입하고 액틴 중합을 촉진하여 가시의 머리가 비대해지고 연결 강도가 영구적으로 강화됩니다.
수상돌기 국소 단백질 합성 (Local Protein Synthesis)
수상돌기 기저부에는 mRNA와 리보솜이 대기하고 있어, 시냅스 활성화 신호가 들어왔을 때 세포체 핵까지 신호를 보내지 않고도 수 분 내에 시냅스 강화에 필요한 새로운 단백질(Arc, PKM-zeta 등)을 현장에서 즉각 합성하여 장기 기억을 고착화합니다.
수상돌기 병변과 주요 신경정신 질환
알츠하이머병 (Alzheimer's Disease)
베타-아밀로이드 올리고머와 타우 단백질 엉킴이 수상돌기 가시를 직접 공격하여 시냅스 소실 및 수상돌기 퇴행을 초래하며, 이는 치매 환자의 극심한 기억력 저하의 직접적 원인입니다.
취약 X 증후군 (Fragile X Syndrome)
FMRP 단백질 결손으로 인해 시냅스 가지치기(Pruning)가 정상적으로 일어나지 못해 미성숙하고 가늘고 긴 수상돌기 가시가 과도하게 밀집되어 지적 장애와 자폐 스펙트럼 증상을 유발합니다.
조현병 (Schizophrenia)
청소년기 후반 대뇌 전전두피질(PFC) 피라미드 뉴런에서 수상돌기 가시가 과도하게 제거(Excessive pruning)되어 가시 밀도가 급감하면서 사고 연합 장애와 인지 왜곡이 발생합니다.
만성 스트레스 및 우울증
과도한 코르티솔 분비는 해마(Hippocampus) 뉴런의 수상돌기 위축과 가시 퇴행을 유발하여 감정 조절 실패와 학습 능력 저하를 야기합니다.